长期以来,科学界普遍认为双链RNA病毒的反义链仅承担复制模板功能、不编码蛋白。但近期苏州大学团队在《PLOS Pathogens》发表题为“IRES-like element-mediated translation of vsp1S4(-) suppresses BmCPV replication via RNAi antagonism"的研究论文,挑战了这一传统认知,在家蚕质型多角体病毒(BmCPV)中鉴定出反义链编码的全新功能性微蛋白vsp1S4(-)。该蛋白依靠独特的类IRES非经典翻译机制合成,通过竞争性结合病毒免疫抑制因子NSP8,瓦解NSP8-AGO2复合物、重启宿主RNAi抗病毒通路,实现病毒自我负反馈制衡,为病毒致病机制解析、抗病毒靶点开发提供了新思路。蓝景科信为该研究提供了Ribo-seq技术服务

一、研究背景:长期被忽视的病毒编码盲区
1.家蚕质型多角体病毒(BmCPV)是侵染家蚕中肠的典型双链RNA病毒,也是昆虫病毒研究的模式病毒,其基因组包含S1-S10共10个双链RNA片段。
在过往数十年的研究中,学界始终默认:
病毒正义链:负责编码结构蛋白、复制酶、调控蛋白,是病毒功能的核心载体;
病毒反义链:仅作为RNA复制的模板,无转录、翻译、编码蛋白的能力,属于“无效序列"。
但随着微蛋白(sORF编码小肽)、非经典翻译机制的深入研究,越来越多证据表明:病毒紧凑基因组中,暗藏大量未被挖掘的隐秘编码信息。
2.同时,昆虫抗病毒的核心通路为RNAi(RNA干扰)通路:宿主依靠AGO2核心蛋白识别病毒RNA、降解病毒基因,实现天然抗病毒。而BmCPV可通过编码NSP8蛋白,结合并抑制AGO2,逃逸宿主免疫,实现自身大量增殖。
3.核心科学问题应运而生:BmCPV的反义链是否存在隐藏编码潜能?是否存在未知蛋白,调控病毒复制与宿主免疫博弈?
二、研究结果
1.挑战传统认知:双链RNA病毒反义链并非无效模板,具备蛋白编码潜能,可通过sORF编码功能性微蛋白。
团队首先通过生物信息学预测,发现BmCPV基因组存在海量未知sORF:正义链148个候选sORF,反义链高达237个候选sORF,反义链编码潜能远超预期。
通过病毒感染家蚕中肠样本,富集小分子量蛋白,结合Ribo-seq翻译组与质谱鉴定,实锤BmCPV反义链可真实转录、翻译,最终锁定S4片段反义链编码的全新微蛋白——vsp1S4(-)(78个氨基酸)。

2.发现全新病毒蛋白:鉴定得到BmCPV反义链编码微蛋白vsp1S4(-),保守性高、定位于细胞膜、属于病毒结构蛋白。
通过时间梯度实验、特异性抗体检测、电镜观察等实验,证实:
vsp1S4(-)在病毒感染24h可被检测,48h表达量达到峰值;
蛋白含跨膜结构域,特异性定位于宿主细胞膜;
该蛋白属于成熟病毒颗粒相关的结构组分,暴露在病毒颗粒表面。

3.发现新型翻译元件:鉴定IRES-like630元件,介导病毒非帽子依赖的非常规翻译。
常规病毒蛋白依赖5´-cap(帽子)结构翻译,而vsp1S4(-)由病毒反义链转录,无帽子结构。
团队进一步筛选并鉴定出630-646nt IRES-like(类内部核糖体进入位点)元件:该元件是vsp1S4(-)翻译的核心,无需帽子结构,可直接招募核糖体启动翻译;突变/删除该元件后,显著削弱翻译活性。

4.阐明全新调控环路:病毒存在自我制衡机制——NSP8促进病毒免疫逃逸、加速复制,vsp1S4(-)反向拮抗NSP8、限制病毒过度增殖。
通过过表达、敲低、突变回补多重实验验证:
过表达vsp1S4(-),病毒核心结构蛋白VP7、病毒基因组拷贝数显著下降;
敲低内源vsp1S4(-),病毒复制能力大幅提升;
只有完整编码的蛋白具备抑制功能,RNA序列本身无作用。

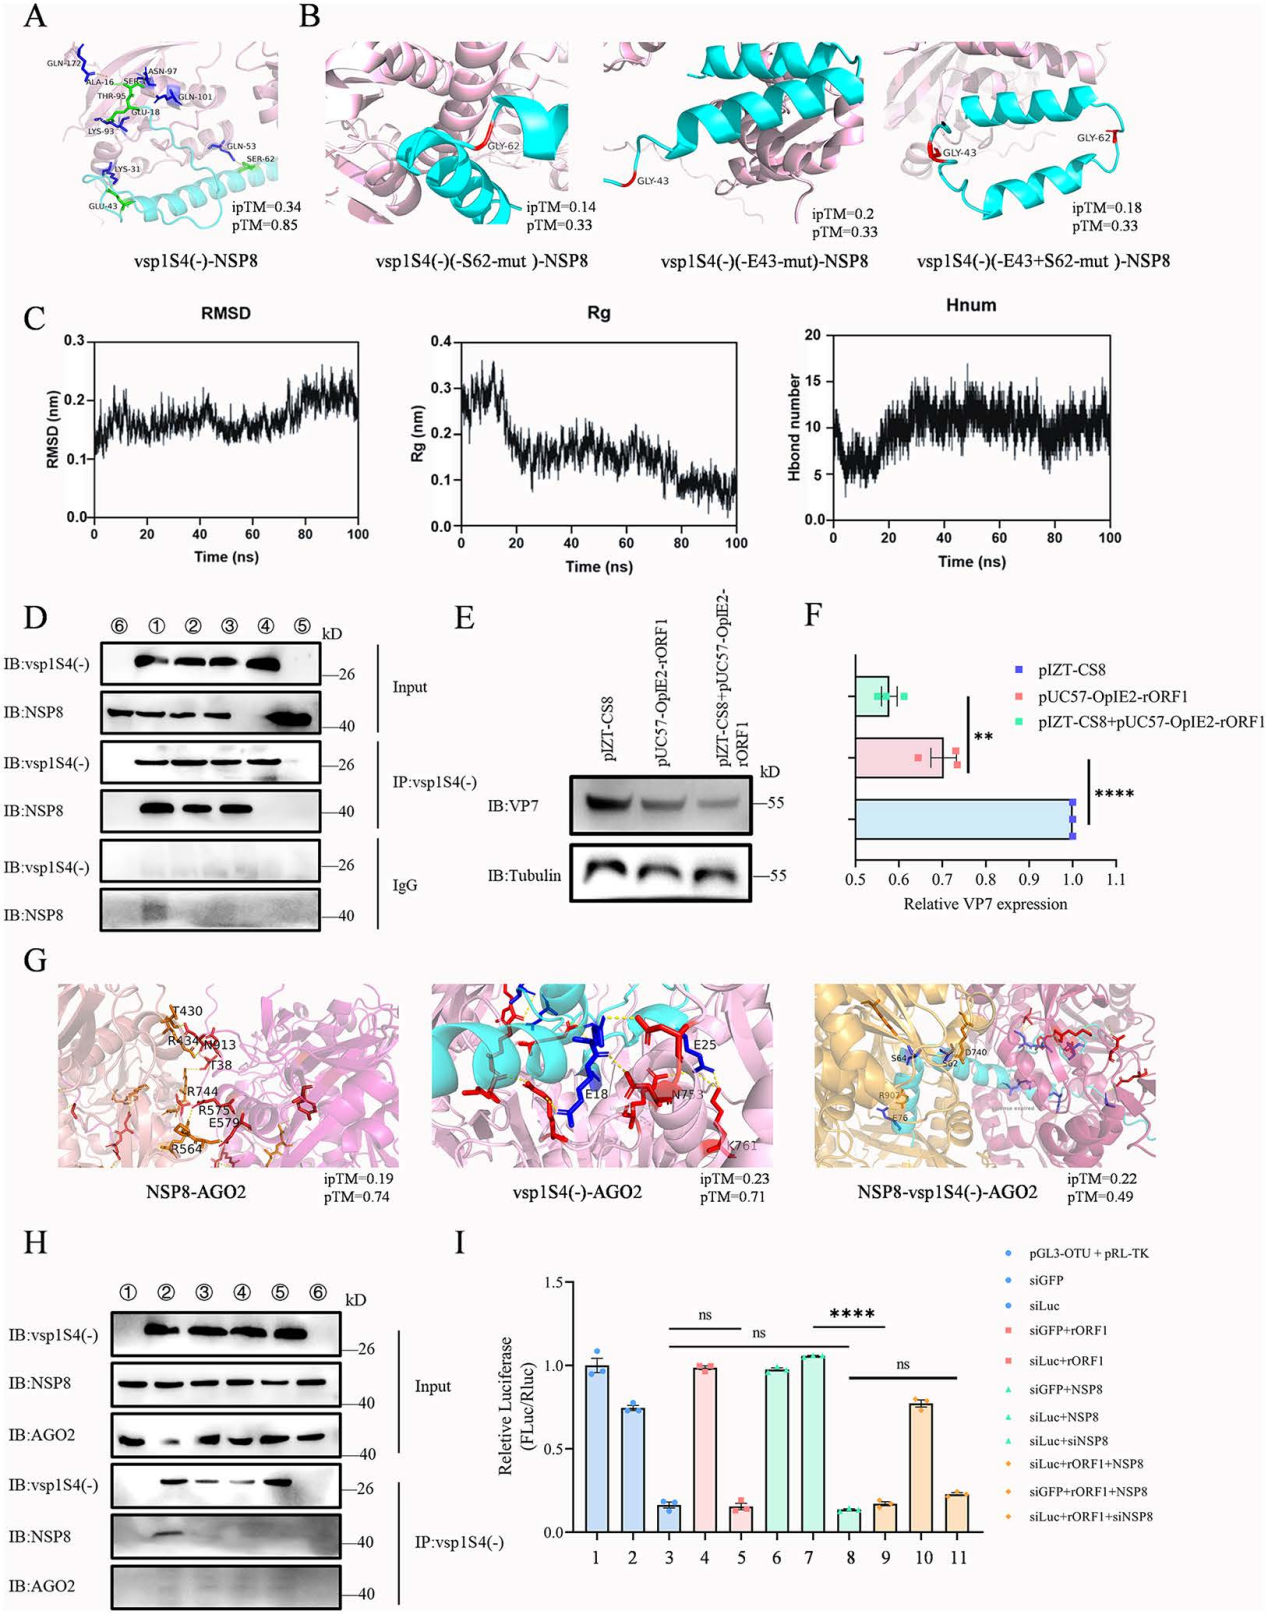
5.明确精准作用机制:vsp1S4(-)不直接激活宿主免疫,仅通过竞争性结合NSP8,特异性恢复被抑制的RNAi通路;双突变S62G/E43G可丧失互作与抗病毒功能。
结合结构模拟与生化实验,阐明核心通路:
病毒NSP8蛋白是RNAi抑制子,通过结合宿主AGO2,阻断宿主RNAi,促进病毒增殖;
vsp1S4(-)通过S62、E43关键氨基酸残基,既可以结合NSP8,也能结合AGO2;
通过竞争抢占NSP8上与AGO2结合的界面,拆散「NSP8-AGO2免疫抑制复合物」,释放AGO2蛋白;
宿主RNAi抗病毒通路被重启,高效降解病毒基因,抑制病毒增殖。
三、全文逻辑链
1.生信预测BmCPV反义链存在大量sORF
2.Ribo-seq+质谱筛选,锁定S4反义链rORF1编码vsp1S4(-)(78 aa)
3.抗体、Northern blot、免疫荧光、电镜证实:真实表达、定位于细胞膜、是病毒颗粒结构蛋白、跨膜、进化保守
4.鉴定IRES-like630元件负责其帽子非依赖翻译;突变验证元件必需性;pull-down得到结合蛋白
5.过表达/敲低证明vsp1S4(-)抑制BmCPV复制
6.AlphaFold3、MD模拟、Co-IP确定关键残基S62/E43,vsp1S4(-)竞争性抢夺NSP8,破坏NSP8-AGO2复合物;双荧光素酶证明只拮抗NSP8恢复RNAi
7.提出模型:dsRNA病毒反义链编码微蛋白作为病毒自我限制因子,微调病毒增殖。
四、全文技术总览
1.多组学联合筛选:Ribo-seq核糖体图谱(验证翻译活性)+ LC-MS/MS质谱(蛋白实鉴),精准挖掘病毒隐秘微蛋白;
2.分子生物学验证:Northern blot、Western blot、免疫荧光、免疫金电镜,验证基因转录、蛋白表达与亚细胞定位;
3.翻译机制鉴定:T7驱动荧光素酶报告实验、RNA截短/点突变、RNA pull-down,解析非经典IRES-like翻译元件功能;
4.蛋白互作验证:Co-IP免疫共沉淀、AlphaFold3结构预测、100ns分子动力学模拟,锁定蛋白互作关键位点;
5.基因功能验证:过表达、siRNA敲低、起始密码子突变,明确蛋白的生物学功能;
6.RNAi通路报告系统:双荧光素酶RNAi活性检测,验证免疫通路调控机制。
上一篇 : 没有了
下一篇 : 翻译组学研究技术上新
 咨询电话